|
|

Fauna silvestre y perros asilvestrados en un refugio de vida silvestre tropical: evidencia complementaria con cámaras trampa y muestreos activos
Nazareth Alfaro-Alfaro 1 , Lucía Isabel López-Umaña 2
 & Jose Manuel Mora 3
1. Universidad Técnica Nacional, Carrera Ingeniería en Ciencias Forestales y Vida Silvestre, sede de Atenas, Atenas, Alajuela, Costa Rica; naalfaroal@est.utn.ac.cr
2. Universidad Técnica Nacional, Unidad de Ciencias Básicas, Sede Atenas, Atenas, Alajuela, Costa Rica; llopez@utn.ac.cr
3. Universidad Técnica Nacional, Carrera de Gestión Ecoturística, Sede Central, Alajuela, Costa Rica; jmorab@utn.ac.cr
Recibido 28-V-2026 ● Corregido 03-VIII-2026 ● Aceptado 04-IX-2026
DOI: https://doi.org/10.22458/urj.v18i1.6592
ABSTRACT. "Wildlife and feral dogs in a tropical wildlife refuge: complementary evidence from camera traps and active surveys." Introduction: In private protected areas, monitoring vertebrates and detecting feral domestic carnivores provide key information for conservation and management. Objective: To document the presence and composition of mammal and bird assemblages, as well as the presence of feral dogs (Canis lupus familiaris) and cats (Felis catus) at Los Cusingos Wildlife Refuge. Methods: We conducted the study from September 8 to November 4, 2024, using diurnal surveys along trails and gardens (active sampling) and camera traps (passive sampling). We installed eight cameras operating continuously for 24 hours in hybrid mode and considered records of the same species at the same camera independent when separated by more than 30 minutes. Feral dogs and cats were individually identified based on visible characteristics. Amphibians and reptiles were also recorded opportunistically. Results: We recorded 136 wildlife species: 97 birds, 26 mammals, 8 reptiles, and 5 amphibians. Camera traps produced 836 valid records corresponding to 53 species, whereas active observations recorded 87 bird species, 10 mammal species, 7 reptile species, and 5 amphibian species. We identified 31 feral dogs and one feral cat. Camera traps were more effective for characterizing mammal diversity, whereas active sampling was more effective for birds. Conclusion: Both methods were complementary, and their combined use provided a more comprehensive characterization of the refuge's fauna. The presence of numerous feral dogs represents a potential threat to native wildlife and requires management and monitoring strategies.
Keywords: animal ecology, geographical distribution, habitat fragmentation, interspecific interaction, introduced species, tropical forests.
RESUMEN. Introducción: en las áreas protegidas privadas, el monitoreo de vertebrados y la detección de carnívoros domésticos asilvestrados aportan información clave para la conservación y el manejo. Objetivo: registrar la presencia y composición del ensamblaje de mamíferos y aves, así como documentar la presencia de perros (Canis lupus familiaris) y gatos (Felis catus) asilvestrados en el Refugio Los Cusingos. Métodos: realizamos el estudio del 8 de septiembre al 4 de noviembre de 2024 mediante recorridos diurnos en senderos y jardines (muestreo activo) y cámaras trampa (muestreo pasivo). Instalamos ocho cámaras activas durante 24 horas en modo híbrido y consideramos independientes los registros de una misma especie en una misma cámara separados por más de 30 minutos. Identificamos individualmente los perros y gatos asilvestrados mediante características visibles. Además, registramos oportunísticamente anfibios y reptiles. Resultados: registramos 136 especies de fauna silvestre: 97 aves, 26 mamíferos, 8 reptiles y 5 anfibios. Las cámaras trampa produjeron 836 registros válidos de 53 especies, mientras que mediante observación activa registramos 87 especies de aves, 10 mamíferos, 7 reptiles y 5 anfibios. Identificamos 31 perros asilvestrados y un gato asilvestrado. Las cámaras fueron más efectivas para caracterizar la diversidad de mamíferos, mientras que el muestreo activo fue más efectivo para aves. Conclusión: ambos métodos fueron complementarios y su combinación permitió una caracterización más completa de la fauna del refugio. La presencia de numerosos perros asilvestrados representa una amenaza potencial para la fauna nativa y requiere estrategias de manejo y monitoreo.
Palabras clave: bosques tropicales, distribución geográfica, ecología animal, especies introducidas, fragmentación del hábitat, interacción interespecífica.
Las aves fueron el principal motivo para la creación del Refugio de Aves Dr. Alexander Skutch-Los Cusingos (en adelante, Los Cusingos) ubicado en el sur de Costa Rica. Debido a ello, la fauna históricamente más estudiada en Los Cusingos ha sido la avifauna, sobre todo debido al esfuerzo del naturalista y propietario original de la propiedad, Alexander Skutch, quien registró 301 especies residentes y migratorias (Mejía, 2017). Además, se han realizado estudios sobre la fauna silvestre en general mediante cámaras trampa, las cuales han proporcionado información básica sobre las especies de otros vertebrados presentes en el sitio (Mejía, 2017). A pesar de estos antecedentes, resulta importante actualizar la información sobre estos grupos de vertebrados, particularmente al considerar la presencia y el posible impacto de especies domésticas asilvestradas sobre la fauna nativa.
La presencia de especies domésticas asilvestradas, animales domésticos o domesticados que viven en las condiciones de un animal salvaje, en áreas naturales representa una amenaza para la conservación de la fauna silvestre por competencia (Gálvez et al., 2021), transmisión de enfermedades (Costanzi et al., 2021) y depredación sobre especies nativas (Zamora-Nasca et al., 2021). En Los Cusingos se han registrado perros (Canis lupus familiaris) y gatos (Felis catus) asilvestrados (Mejía, 2017). Los perros asilvestrados pueden sobrevivir alimentándose de desechos orgánicos humanos, pero también depredan fauna silvestre de distintos tamaños y consumen carroña (Weber, 2010). Aunque su actividad suele ser principalmente diurna, en condiciones silvestres pueden presentar hábitos crepusculares o nocturnos (Álvarez-Romero et al., 2008). De igual modo, los gatos asilvestrados tienen hábitos predominantemente nocturnos, son cazadores eficaces que pueden generar impactos negativos significativos sobre la fauna silvestre, al depredar aves, roedores y otros vertebrados pequeños y medianos (Álvarez-Romero et al., 2008).
El objetivo de este estudio fue registrar la riqueza de especies de aves y mamíferos en el Refugio Los Cusingos, así como de perros y gatos asilvestrados, mediante muestreos pasivos y activos. Además, registramos las especies de anfibios y reptiles con base en los encuentros oportunistas de individuos de estas dos clases de vertebrados. Estimamos la riqueza específica por grupo taxonómico y documentamos la presencia de perros y gatos asilvestrados como un insumo para evaluar su posible influencia sobre la fauna silvestre del sitio.
Antes de calcular los índices ecológicos, cuantificamos el esfuerzo de muestreo, incluido el número total de horas/cámara y la distancia recorrida durante los muestreos directos. Posteriormente, calculamos los índices de Dominancia, Shannon, Simpson, Menhinick, Margalef, Pielou y alfa de Fisher, con el fin de obtener una interpretación ecológica más robusta de la diversidad de mamíferos y aves del refugio. La información generada aporta una línea base para orientar acciones de conservación y manejo en Los Cusingos.
MATERIALES Y MÉTODOS
Sitio de estudio: los Cusingos tiene una extensión de 78ha y es un área silvestre protegida de propiedad privada que forma parte del Sistema de Reservas Privadas del Centro Científico Tropical (Mejía, 2017). Se ubica en Quizarrá, El General, Pérez Zeledón, San José, Costa Rica (9°20′1,01″ N; 83°37′38,91″ W). En las inmediaciones del refugio predominan los potreros para ganadería y los cultivos agrícolas, principalmente café y caña de azúcar, intercalados con bosques secundarios y bosques ribereños que conforman un paisaje altamente fragmentado, pero funcionalmente conectado mediante corredores ribereños y remanentes boscosos (Acuña-Prado et al., 2017).
Los Cusingos forma parte del Corredor Biológico Alexander Skutch (COBAS), un corredor biológico con una extensión de 6 012,60ha que conecta los bosques premontanos de Los Cusingos (650-750m s.n.m.) con las zonas montanas del Parque Nacional Chirripó, a 1 800m s.n.m. (Sistema Nacional de Áreas de Conservación [SINAC], 2018). La estructura del paisaje del corredor está compuesta aproximadamente por un 50% de cobertura forestal, representada principalmente por bosques de galería densos y en regeneración, mientras que el 50% restante corresponde a usos no forestales, incluidos potreros, cultivos agrícolas, asentamientos rurales e infraestructura asociada (SINAC, 2018). Asimismo, el corredor presenta una cobertura forestal cercana al 42% de su superficie total, lo que sugiere que las actividades de restauración y reforestación deberían ser priorizadas (Acevedo et al., 2016). El COBAS busca asegurar la conectividad entre el Refugio de Vida Silvestre Los Cusingos, el Refugio de Vida Silvestre Las Nubes y el Parque Nacional Chirripó, los cuales se encuentran conectados principalmente a través del río Peñas Blancas, razón por la cual este río ha sido considerado la "columna vertebral" del corredor (SINAC, 2018). Esto se debe a que la mayor parte del corredor se encuentra dentro de la subcuenca del río Peñas Blancas, la cual representa aproximadamente el 74,9% de la superficie total del COBAS (Acuña-Prado et al., 2017; Arauz-Beita & Arias-Navarro, 2016).
En términos de zonas de vida, en el COBAS predomina el bosque pluvial premontano, que cubre aproximadamente el 57% del corredor, mientras que el bosque pluvial montano bajo representa alrededor del 5% de las zonas más elevadas (SINAC, 2018). El mosaico de usos del suelo y coberturas vegetales convierte a la región en un importante corredor para el movimiento y conservación de la biodiversidad entre las tierras bajas del valle de El General y las montañas de la Cordillera de Talamanca. El COBAS incluye tres zonas de vida según Holdridge (1967): bosque muy húmedo premontano (bmh-P), bosque pluvial premontano (bp-P) y bosque pluvial montano bajo (bp-MB) (Mejía, 2017). Los Cusingos se sitúa en la zona de vida bmh-P (Hernández, 2010). La precipitación promedio anual fue de 3 745mm y la temperatura media anual varió entre 22 y 24°C (Centro Científico Tropical [CCT], 2022). El sitio presenta un periodo seco de cuatro meses (diciembre a marzo) y un periodo lluvioso de abril a noviembre (CCT, 2022).
Periodo de estudio y diseño de muestreo: realizamos el estudio del 8 de septiembre al 4 de noviembre de 2024 (nueve semanas). Combinamos muestreo activo (recorridos diurnos) y muestreo pasivo (cámaras trampa, huellas y escucha de ladridos de perros). En total realizamos 16 recorridos en los senderos muestreados: Las Aves (910m), Petroglifo (927m), El Naturalista (1 000m) y los alrededores del jardín Pamela Lankester (en adelante el jardín de Pamela) (Fig. 1). Los sitios los seleccionamos debido a la presencia previa de indicios de fauna (pasos, rastros, olores), evidencias de movimiento y cercanía a los cuerpos de agua, entre otros aspectos. No realizamos recorridos nocturnos por no contar con el permiso respectivo según las condiciones acordadas de la administración del refugio.
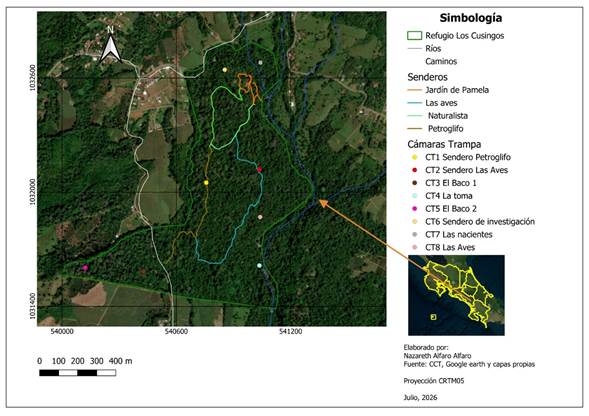
Fig. 1. Área de estudio, senderos y ubicación de ocho cámaras trampa colocadas dentro del Refugio de Aves Alexander Skutch-Los Cusingos, Quizarrá, El General, Pérez Zeledón, San José, Costa Rica.
Muestreo activo (recorridos de observación): realizamos los recorridos entre las 5:30 y las 9:00 a.m., para coincidir con la mayor actividad de aves y mamíferos diurnos y reducir el efecto de las lluvias intensas vespertinas. Durante cada recorrido registramos las especies detectadas y el número de individuos mediante observación directa. Las huellas observadas y los ladridos de perros escuchados se utilizaron únicamente para documentar la presencia de las respectivas especies en los diferentes senderos, por lo que estos registros fueron considerados únicamente como evidencia de presencia en el sendero correspondiente y no para estimar abundancias.
Muestreo pasivo (cámaras trampa): utilizamos cámaras con sensor de movimiento (Wemmer et al., 1996). Instalamos ocho cámaras trampa (cuatro Bushnell Spot-On, una Bushnell Core DS, una Coolifepro PH830W y dos Bushnell Prime Low Glow) separadas entre 100 y 600m, a 30-50cm sobre el suelo, fijadas al tronco de los árboles (TABLA S1). Eliminamos la vegetación frente a la cámara para reducir activaciones por el viento o la lluvia. Las cámaras permanecieron activas por 24h en modo híbrido (imágenes y video) y las revisamos cada 15-30 días según su ubicación. Los puntos de muestreo los georreferenciamos con GPSMAP 64s.
Definición de registros independientes: consideramos registros independientes aquellos eventos de la misma especie registrados por una misma cámara trampa separados por más de 30 minutos, con el fin de reducir la pseudorreplicación. En el caso de los perros y gatos asilvestrados, los registros los asignamos a individuos particulares con base en características visibles (por ejemplo, el tamaño, la coloración o patrón del pelaje y los rasgos distintivos); por lo tanto, consideramos un registro independiente cuando correspondió a un individuo distinto, o cuando se trató del mismo individuo, pero con una separación temporal de más de 30 minutos en la misma cámara.
Análisis de datos: calculamos las métricas descriptivas de riqueza específica observada (S) y abundancia total (N) por grupo taxonómico, sitio y método de muestreo. Para la estimación de la riqueza potencial de especies utilizamos el programa Species Diversity and Richness IV (Pisces Conservation Ltd., Lymington, UK), mediante estimadores no paramétricos de riqueza.
Para evaluar la estructura y diversidad de las comunidades de mamíferos y aves registradas mediante los métodos de muestreo activo y pasivo, calculamos diversos índices ecológicos. Estimamos los índices de diversidad de Shannon-Wiener y Simpson, el índice de dominancia, los índices de riqueza específica de Margalef y Menhinick, el índice de equidad de Pielou y el índice alfa de Fisher. Estos índices permitieron evaluar diferentes componentes de la diversidad biológica, incluidas riqueza, abundancia relativa, dominancia y distribución de individuos entre especies. Los análisis los realizamos de manera independiente para mamíferos y aves, y para cada método de muestreo, con el objetivo de comparar la capacidad de ambos enfoques para caracterizar la diversidad de vertebrados en el refugio. La interpretación conjunta de estos índices permitió determinar la complementariedad entre los métodos de muestreo y su eficiencia relativa para la detección de cada grupo taxonómico.
RESULTADOS
El esfuerzo de muestreo activo fue de 87,64km de recorrido acumulado en los senderos durante la ejecución del proyecto. Para el muestreo pasivo, el esfuerzo total alcanzó 36 936 horas-cámara (1 539 días-cámara).
Riqueza y composición de fauna silvestre: registramos 136 especies de fauna silvestre detectadas durante el trabajo de campo: 97 especies de aves, 26 de mamíferos (TABLA 1). Incluimos ocho especies de reptiles y cinco de anfibios que detectamos de manera fortuita durante los muestreos (TABLA 1). Además, registramos 31 perros y un gato asilvestrados. Las familias con mayor número de especies de mamíferos fueron Didelphidae con cuatro y Felidae y Procyonidae, con tres especies cada una. En el caso de las aves, las familias más diversas fueron Thraupidae y Tyrannidae (con 13 y 10 especies respectivamente), seguidas de Parulidae (siete especies). Presentamos la lista por familia y especie, con nombre común, sendero y método de detección (TABLAS 2, 3 y 4). Pocas familias concentraron la mayor riqueza, mientras que 16 familias estuvieron representadas por una sola especie: Accipitridae, Ardeidae, Capitonidae, Corvidae, Cotingidae, Cuculidae, Falconidae, Formicariidae, Icteridae, Momotidae, Onychorhynchidae, Passerellidae, Polioptilidae, Psittacidae, Rallidae, Trogonidae.
TABLA 1
Resumen de la riqueza de especies registradas por grupo taxonómico en el Refugio de Aves Dr. Alexander Skutch-Los Cusingos, Pérez Zeledón, San José, Costa Rica (septiembre-noviembre 2024)
|
Grupo taxonómico |
Número de especies |
Familias con mayor riqueza |
Métodos de registro |
|
Aves |
97 |
Thraupidae, Tyrannidae |
Pasivo y activo |
|
Mamíferos |
26 |
Didelphidae, Felidae |
Pasivo y activo |
|
Reptiles |
8 |
Corytophanidae, Teiidae |
Pasivo y activo |
|
Anfibios |
5 |
Bufonidae |
Activo |
|
Domésticos asilvestrados |
2 |
Canidae y Felidae |
Pasivo y activo |
TABLA 2
Familias de aves registradas y número de especies por familia y su porcentaje respectivo en el Refugio de Aves Dr. Alexander Skutch-Los Cusingos, Costa Rica (septiembre-noviembre 2024)
|
Familia |
Número de especies |
Porcentaje |
|
|
Thraupidae |
13 |
13,4 |
|
|
Tyrannidae |
10 |
10,3 |
|
|
Parulidae |
7 |
7,2 |
|
|
Trochilidae |
5 |
5,1 |
|
|
Columbidae |
4 |
4,1 |
|
|
Furnariidae |
4 |
4,1 |
|
|
Pipridae |
4 |
4,1 |
|
|
Thamnophilidae |
4 |
4,1 |
|
|
Turdidae |
4 |
4,1 |
|
|
Picidae |
3 |
3,1 |
|
|
Tityridae |
3 |
3,1 |
|
|
Troglodytidae |
3 |
3,1 |
|
|
Vireonidae |
3 |
3,1 |
|
|
Cardinalidae |
2 |
2,0 |
|
|
Cathartidae |
2 |
2,0 |
|
|
Cracidae |
2 |
2,0 |
|
|
Fringillidae |
2 |
2,0 |
|
|
Ramphastidae |
2 |
2,0 |
|
|
Strigidae |
2 |
2,0 |
|
|
Tinamidae |
2 |
2,0 |
|
|
Otras familias con 1 especie |
16 |
16,5 |
|
TABLA 3
Especies de anfibios y reptiles encontradas durante los recorridos diurnos en el Refugio de Aves Dr. Alexander Skutch-Los Cusingos, Costa Rica (septiembre-noviembre 2024)
|
Familia |
Especie |
Localidad de registro |
|
Craugastoridae |
Craugastor stejnegerianus |
Jardín de Pamela, Sendero Las Aves |
|
Bufonidae |
Incilius aucoinae |
Sendero Petroglifo, Jardín de Pamela |
|
Rhaebo haematiticus |
Sendero Las Aves, Sendero de Investigación |
|
|
Ranidae |
Lithobates warszewitschii |
Sendero El Naturalista; Sendero Las Aves |
|
Hylidae |
Smilisca sordida |
Jardín de Pamela |
|
Corytophanidae |
Basiliscus basiliscus |
Jardín de Pamela |
|
Corytophanes cristatus |
Sendero El Naturalista |
|
|
Teiidae |
Holcosus festivus* |
Jardín de Pamela, El Baco Arriba; La Naciente; Sitio Las Aves |
|
Holcosus quadrilineatus |
Sitio Las Aves |
|
|
Iguanidae |
Iguana iguana* |
Jardín de Pamela; La Naciente, Sendero de Investigación |
|
Scincidae |
Scincella cherriei |
Sendero Las Aves |
|
Colubridae |
Phrynonax poecilonotus |
Jardín de Pamela |
|
Viperidae |
Bothrops asper |
Sendero Petroglifo |
* apareció también en imágenes de cámara trampa
Mediante las cámaras trampa detectamos varios mamíferos medianos y grandes como Puma concolor, Herpailurus yagouaroundi, Leopardus pardalis, Tamandua mexicana, Dicotyles tajacu, Cebus imitator y Canis latrans. Esta última especie, el coyote, es un registro nuevo en Los Cusingos. Detectamos coyotes en El Baco, La Toma y en el sendero Las Aves (Fig. 2).

Fig. 2. Imagen de un coyote (Canis latrans) obtenida de una cámara trampa en el Refugio de Aves Alexander Skutch-Los Cusingos, Quizarrá, El General, Pérez Zeledón, San José, Costa Rica.
TABLA 4
Especies de mamíferos registrados según el método en el Refugio de Aves Dr. Alexander Skutch-Los Cusingos, Costa Rica (septiembre-noviembre 2024)
|
Familia |
Especie |
Localidad de registro |
Método |
|
Didelphidae |
Caluromys derbianus |
La Naciente |
Pasivo |
|
Didelphis marsupialis |
El Baco; El Baco Arriba; La Naciente; La Toma; Sitio Las Aves; Sendero Petroglifo; Sendero de Investigación |
Pasivo |
|
|
Marmosa mexicana |
La Naciente |
Pasivo |
|
|
Philander melanurus |
El Baco; El Baco Arriba; La Naciente; La Toma; Sitio Las Aves; Sendero de Investigación |
Pasivo |
|
|
Bradypodidae |
Bradypus variegatus |
Sendero Las Aves, Sendero de Investigación |
Activo |
|
Myrmecophagidae |
Tamandua mexicana |
El Baco Arriba; La Toma; Sitio Las Aves; Sendero Petroglifo; Sendero de Investigación |
Pasivo |
|
Dasypodidae |
Dasypus novemcinctus |
El Baco; El Baco Arriba; La Naciente; La Toma; Sitio Las Aves; Sendero Petroglifo; Sendero de Investigación |
Pasivo |
|
Geomyidae |
Heterogeomys underwoodi |
Sendero Las Aves |
Activo |
|
Echimyidae |
Proechimys semispinosus |
Sitio Las Aves; La Naciente |
Pasivo |
|
Cuniculidae |
Cuniculus paca |
El Baco; El Baco Arriba; La Naciente; La Toma; Sitio Las Aves; Sendero de Investigación |
Pasivo |
|
Dasyproctidae |
Dasyprocta punctata |
El Baco; El Baco Arriba; La Naciente; La Toma; Sitio Las Aves; Sendero Petroglifo; Sendero de Investigación |
Pasivo y activo |
|
Sciuridae |
Syntheosciurus granatensis |
Jardín de Pamela; El Baco Arriba; Sitio Las Aves; Sendero Petroglifo; Sendero de Investigación |
Pasivo y activo |
|
Echinosciurus variegatoides |
Jardín de Pamela; La Naciente; Sitio Las Aves |
Pasivo y activo |
|
|
Erethizontidae |
Coendou mexicanus |
Sitio Las Aves |
Activo |
|
Cebidae |
Cebus imitator |
Jardín de Pamela; El Baco; Sendero de Investigación; La Naciente; Sitio Las Aves |
Pasivo y activo |
|
Canidae |
Canis latrans |
El Baco; La Toma; Sitio Las Aves |
Pasivo |
|
Felidae |
Leopardus pardalis |
El Baco; El Baco Arriba; La Toma; Sitio Las Aves; Sendero de Investigación |
Pasivo |
|
Puma concolor |
El Baco; Sendero Petroglifo; Sendero de Investigación |
Pasivo |
|
|
Herpailurus yagouaroundi |
Sendero de Investigación |
Pasivo |
|
|
Mustelidae |
Eira barbara |
El Baco; La Naciente; La Toma; Sendero de Investigación |
Pasivo |
|
Mephitidae |
Conepatus semistriatus |
La Naciente, La Toma, Sendero de Investigación |
Pasivo |
|
Procyonidae |
Nasua narica |
El Baco; El Baco Arriba; La Naciente; La Toma; Sitio Las Aves; Sendero Petroglifo; Sendero de Investigación |
Pasivo |
|
Potos flavus |
Sendero El Naturalista, Sendero Petroglifo |
Activo |
|
|
Procyon lotor |
Sendero Petroglifo, El Baco |
Pasivo y activo |
|
|
Tayassuidae |
Dicotyles tajacu |
El Baco, La Naciente, El Baco Arriba |
Pasivo |
Registro mediante cámaras trampa: obtuvimos 836 registros válidos, correspondientes a 53 especies (28 de aves, 22 de mamíferos y tres de reptiles), distribuidas en los ocho sitios de muestreo. Los sitios con mayor número de especies de mamíferos fueron La Naciente y el Sendero de Investigación, con 15 especies cada uno, seguidos de El Baco (14 especies) y La Toma (12 especies). En cuanto a las aves, el sitio Las Aves fue el de mayor riqueza con 18 especies, seguido de El Baco Arriba con 14, y La Toma y el Sendero de Investigación con 12 especies cada uno. Se aprecia que en el Sendero Petroglifo no registramos aves mediante el muestreo pasivo (Fig. 3). En general, la riqueza promedio de mamíferos por sitio (11,4 especies) fue superior a la de aves (9,5 especies).
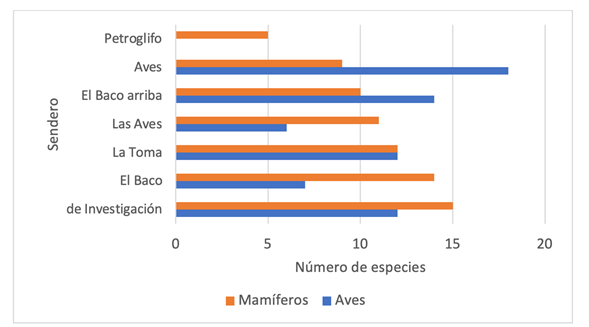
Fig. 3. Riqueza específica registrada mediante cámaras trampa para aves y mamíferos en los sitios de muestreo del Refugio de Aves Dr. Alexander Skutch-Los Cusingos, Costa Rica (septiembre-noviembre 2024).
Registros mediante observación directa: mediante el método activo (recorridos diurnos), registramos 87 especies de aves y 10 de mamíferos silvestres distribuidas en cinco sitios de muestreo. Además, detectamos cinco especies de anfibios, y siete de reptiles. El Jardín de Pamela fue el de mayor riqueza de especies, mientras que el Sendero El Naturalista fue el de menor riqueza (Fig. 4). Las aves fueron el grupo más diverso en todos los sitios, con una riqueza promedio de 26 especies por sitio, seguidas por los mamíferos silvestres (3,2 especies), los anfibios (1,8 especies) y los reptiles (1,4 especies). Las aves observadas pertenecieron principalmente a las familias Thraupidae, Tyrannidae y Parulidae, que concentraron la mayor proporción de especies en todos los senderos. Entre los mamíferos, registramos representantes de Didelphidae, Procyonidae y Felidae, mientras que los anfibios correspondieron principalmente a Bufonidae y los reptiles a Corytophanidae.
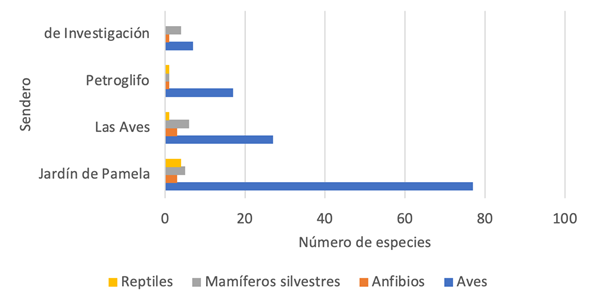
Fig. 4. Riqueza específica registrada mediante el método de observación directa para aves, anfibios, mamíferos y reptiles en cinco sitios de muestreo del Refugio de Aves Alexander Skutch-Los Cusingos. Quizarrá, El General, Pérez Zeledón, San José, Costa Rica. (septiembre-noviembre 2024).
Índices ecológicos: al comparar la diversidad de mamíferos y aves obtenida mediante los métodos de muestreo activo y pasivo, encontramos un patrón contrastante. En los mamíferos, la diversidad fue mayor con el método pasivo que con el método activo, tanto según el índice de diversidad de Shannon (H' = 2,33 vs. 1,42) como el índice de Simpson (0,84 vs. 0,63). En contraste, para las aves los valores de diversidad fueron mayores con el método activo que con el método pasivo, tanto para el índice de Shannon (H' = 3,94 vs. 2,61) como para el índice de Simpson (0,96 vs. 0,89). El valor del índice de dominancia fue mayor con el muestreo activo que con el pasivo para las especies de mamíferos detectadas en el refugio (0,36 vs. 0,16). En cambio, para las especies de aves, los valores de dominancia fueron más altos con el método pasivo (0,11 vs. 0,03).
El índice de Margalef fue mayor en el muestreo activo que en el pasivo para ambos grupos taxonómicos, aunque la diferencia fue mucho más marcada en las aves. En los mamíferos, el índice alcanzó un valor de 3,39 en el muestreo activo y de 1,78 en el pasivo, mientras que en las aves fue de 13,91 y 4,64, respectivamente. En cuanto al índice de equidad de Pielou, las diferencias entre ambos métodos fueron menores. En los mamíferos, el muestreo pasivo presentó un valor ligeramente superior al del muestreo activo (0,75 vs. 0,61), mientras que en las aves ocurrió lo contrario, con un valor mayor en el muestreo activo que en el pasivo (0,88 vs. 0,78).
El índice de Menhinick tuvo valores de 0,80 y 1,0 para los mamíferos registrados mediante los métodos de muestreo activo y pasivo, respectivamente. En las aves, los valores fueron de 3,95 para el muestreo activo y 1,53 para el pasivo. Finalmente, el índice alfa de Fisher tuvo valores de 2,38 y 4,74 para los mamíferos registrados mediante los métodos activo y pasivo, respectivamente, mientras que para las aves los valores fueron de 30,94 y 7,27, también para los métodos activo y pasivo, respectivamente.
En conjunto, estos índices evidencian que el muestreo activo fue más eficiente para registrar la riqueza de especies de aves, mientras que el muestreo pasivo permitió obtener una representación más completa de la diversidad de mamíferos.
Registros de perros y gatos asilvestrados: mediante la revisión detallada de las imágenes obtenidas con las cámaras trampa, identificamos 31 perros asilvestrados y un único gato asilvestrado, este último registrado en dos de los ocho sitios de muestreo. Detectamos los perros en los ocho sitios donde instalamos cámaras trampa. Mostramos una imagen captada por una de las cámaras trampa, en la que se observa un grupo de perros asilvestrados mientras se desplazan dentro del bosque (Fig. 5). El mayor número de individuos identificados correspondió al sendero El Baco (12 perros), seguido por El Baco Arriba (9) y La Toma (8); los restantes los registramos en los demás senderos (Fig. 6). El número total de perros asilvestrados supera los 31 individuos, ya que algunos fueron registrados en más de un sitio de muestreo. En la misma figura también incluimos el único gato asilvestrado detectado, registrado tanto en el sendero de Investigación como en La Naciente. Además, durante los recorridos de campo observamos un grupo de perros asilvestrados acechando a una guatusa (Dasyprocta punctata) en el sendero de Investigación.
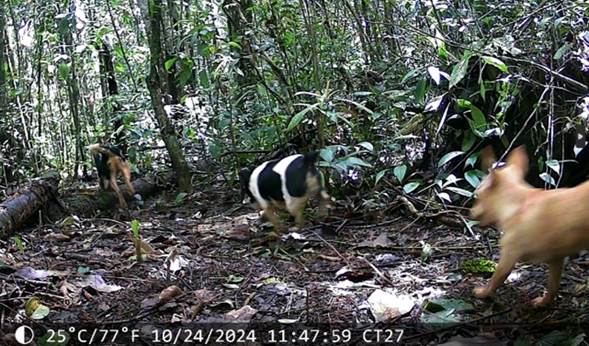
Fig. 5. Perros asilvestrados registrados mediante cámaras trampa dentro del bosque del Refugio de Aves Alexander Skutch-Los Cusingos. Quizarrá, El General, Pérez Zeledón, San José, Costa Rica. (septiembre-noviembre 2024).
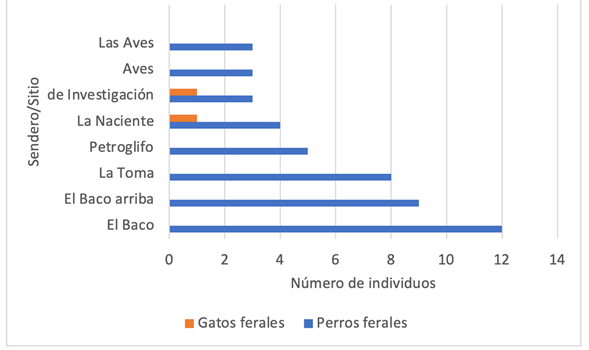
Fig. 6. Número de individuos de perros (Canis lupus familiaris) y gatos (Felis catus) asilvestrados identificados mediante cámaras trampa en ocho sitios de muestreo del Refugio de Aves Dr. Alexander Skutch-Los Cusingos, Pérez Zeledón, San José, Costa Rica (septiembre-noviembre 2024).
DISCUSIÓN
El Refugio de Aves Dr. Alexander Skutch-Los Cusingos mantuvo una elevada riqueza de vertebrados pese a su reducido tamaño (78ha) y a estar inmerso en una matriz dominada por actividades agropecuarias y asentamientos humanos, registrándose 136 especies de vertebrados silvestres durante únicamente nueve semanas de muestreo. Debemos hacer notar que estos resultados representan un periodo específico por lo que la composición faunística podría variar estacionalmente. No obstante, los resultados resaltan la importancia de las reservas privadas y de los corredores biológicos para la conservación de la biodiversidad en paisajes fragmentados del sur de Costa Rica, particularmente en áreas que mantienen conectividad funcional con remanentes boscosos y bosques ribereños del Corredor Biológico Alexander Skutch.
Las aves constituyeron el grupo con mayor riqueza específica (97 especies, TABLA S2), resultado esperado cuando se considera que Los Cusingos fue originalmente creado para la protección de la avifauna y que históricamente se han documentado 301 especies en la reserva (Mejía, 2017). La dominancia de las familias Thraupidae, Tyrannidae y Parulidae coincide con patrones descritos para bosques premontanos y paisajes agrícolas arbolados de Mesoamérica, donde los tángaras, atrapamoscas y reinitas suelen representar una elevada proporción de las comunidades de aves debido a su amplia diversidad ecológica y capacidad para utilizar ambientes secundarios y bordes de bosque (Joyce et al., 2024; Latta et al., 2017; Stiles & Skutch, 1989). La presencia simultánea de especies residentes y migratorias, especialmente dentro de Parulidae, probablemente estuvo favorecida por el periodo de muestreo, que coincidió con la migración otoñal boreal (septiembre-noviembre).
La riqueza de mamíferos registrada (26 especies) fue notable para un área protegida de dimensiones relativamente pequeñas y evidencia la importancia del refugio como hábitat y corredor para mamíferos medianos y grandes en el valle de El General. Destaca particularmente la presencia simultánea de tres especies de felinos silvestres (Leopardus pardalis, Puma concolor y Herpailurus yagouaroundi), así como de pecaríes, tamandúas y primates, especies que suelen ser sensibles a la pérdida de cobertura forestal y a la perturbación humana (Mora & López, 2026). La detección de estos carnívoros superiores sugiere que el corredor mantiene todavía recursos tróficos y conectividad suficientes para sostener poblaciones viables o al menos individuos en movimiento entre remanentes boscosos mayores de la Cordillera de Talamanca.
Particularmente relevante fue el registro de Canis latrans, el cual constituye un nuevo reporte para Los Cusingos. La expansión del coyote hacia ambientes agrícolas y suburbanos ha sido ampliamente documentada en Centroamérica durante las últimas décadas y se ha asociado con procesos de deforestación, apertura del paisaje y disponibilidad de recursos asociados a actividades humanas (Mora, 2025). Su presencia en la reserva podría reflejar la creciente antropización del paisaje circundante y la alta conectividad entre ambientes naturales y modificados.
Los valores obtenidos para los índices de Shannon y Simpson revelaron patrones contrastantes entre mamíferos y aves. En los mamíferos, ambos índices mostraron valores más altos para el muestreo pasivo, lo que sugiere que las cámaras trampa registraron una comunidad más diversa, con una representación más equilibrada de las especies y una menor dominancia de unos pocos taxones. En contraste, en las aves ambos índices fueron mayores para el muestreo activo, lo que indica que los recorridos de observación permitieron caracterizar una comunidad más diversa y mejor representada, probablemente porque muchas especies, especialmente las de hábitos arborícolas o altamente móviles, tienen una baja probabilidad de ser detectadas mediante cámaras trampa. Aunque ambos índices describen la diversidad, Shannon es más sensible a la presencia de especies poco comunes, mientras que Simpson refleja principalmente el grado de dominancia de las especies más abundantes (Brower et al., 1998); por ello, la interpretación conjunta de ambos proporciona una visión más completa de la estructura de las comunidades.
Los valores del índice de Dominancia variaron según el método de muestreo y el grupo taxonómico evaluado. En mamíferos, la mayor dominancia observada en el muestreo activo en comparación con el pasivo sugiere una mayor concentración de los registros en pocas especies. Por el contrario, en aves, la dominancia fue mayor en el muestreo pasivo que en el activo. Estos resultados podrían indicar que ambos métodos difieren en su capacidad para detectar especies dentro de cada grupo, por lo que las diferencias observadas probablemente reflejan, al menos en parte, variaciones en detectabilidad además de posibles diferencias en la estructura de la comunidad registrada.
Los índices de Margalef y Pielou complementaron estos resultados al evaluar componentes específicos de la diversidad. El índice de Margalef, que estima la riqueza específica corrigiendo por el tamaño de la muestra, mostró que el muestreo pasivo registró una mayor riqueza relativa de mamíferos, mientras que en las aves el muestreo activo detectó un número considerablemente mayor de especies. Por su parte, el índice de equidad de Pielou indicó que las comunidades de mamíferos registradas mediante cámaras trampa tuvieron una distribución más uniforme de las abundancias entre especies, mientras que en las aves la mayor equidad correspondió al muestreo activo, lo que sugiere que los recorridos permitieron detectar una representación más homogénea de la comunidad.
Finalmente, el índice de Menhinick, otra medida de riqueza específica relativa, corroboró estos patrones. En los mamíferos tuvo valores más altos para el muestreo pasivo, lo que indica que las cámaras trampa detectaron un mayor número de especies en relación con el número de individuos registrados. En contraste, en las aves este índice fue considerablemente mayor en el muestreo activo, lo que confirma la mayor eficiencia de los recorridos para registrar la riqueza específica de este grupo. En conjunto, los diferentes índices de diversidad muestran que ambos métodos de muestreo son complementarios: las cámaras trampa resultan más eficientes para caracterizar la diversidad de mamíferos terrestres, mientras que los recorridos activos son claramente superiores para evaluar la riqueza y diversidad de las comunidades de aves.
La riqueza relativamente baja de anfibios (cinco especies) y reptiles (ocho especies) probablemente se relaciona con el carácter oportunista del muestreo para estos grupos y con la fuerte estacionalidad de su actividad. No obstante, las especies registradas corresponden principalmente a taxones característicos de bosques húmedos premontanos y ambientes ribereños del sur de Costa Rica, incluyendo Craugastor stejnegerianus, Rhaebo haematiticus, Lithobates warszewitschii y Bothrops asper (Sasa et al., 2010). La presencia de estas especies sugiere la existencia de microhábitats relativamente conservados y disponibilidad permanente de cuerpos de agua o alta humedad ambiental dentro del refugio.
Uno de los resultados más relevantes del estudio fue el elevado número de perros asilvestrados detectados dentro del bosque, con al menos 31 individuos identificados y presencia en todos los sitios monitoreados mediante cámaras trampa. En contraste, únicamente se registró un gato asilvestrado. Aunque el presente estudio no fue diseñado para evaluar formalmente relaciones entre la abundancia de fauna silvestre y la presencia de perros o gatos, la amplia distribución espacial de los perros dentro de la reserva sugiere un elevado potencial de interacción con la fauna nativa.
Los perros asilvestrados pueden afectar la fauna silvestre mediante depredación directa, competencia, persecución, transmisión de enfermedades y alteración del comportamiento de las especies nativas (Álvarez-Romero et al., 2008; Hughes & Macdonald, 2013). Diversos estudios han demostrado que estos animales pueden provocar desplazamientos espaciales, cambios en los patrones de actividad y reducción en la ocupación de mamíferos y aves silvestres, especialmente en paisajes fragmentados y próximos a asentamientos humanos (Álvarez-Romero et al., 2008; Hughes & Macdonald, 2013). La observación directa de perros acechando una guatusa (Dasyprocta punctata) dentro del refugio constituye evidencia local de estas interacciones potencialmente negativas.
Aunque únicamente registramos un gato asilvestrado, el impacto potencial de esta especie no debe subestimarse. Los gatos asilvestrados constituyen depredadores altamente eficientes de aves, pequeños mamíferos, reptiles y anfibios (Álvarez-Romero et al., 2008). La evidencia acumulada durante las últimas décadas demuestra que los gatos asilvestrados y semidomiciliados representan uno de los principales agentes de mortalidad antropogénica para aves y pequeños vertebrados, especialmente en áreas protegidas rodeadas por ambientes urbanos y agrícolas (Loss et al., 2013). En Estados Unidos de América, se estima que los gatos asilvestrados causan anualmente la muerte de entre 1,3 y cuatro mil millones de aves y entre 6,3 y 22,3 mil millones de mamíferos, donde la mayor parte de esta mortalidad es atribuible a individuos sin propietario o parcialmente dependientes de los humanos (Loss et al., 2013).
La elevada abundancia de perros probablemente está relacionada con comportamientos humanos asociados a la tenencia irresponsable de mascotas, el abandono de animales, la falta de esterilización y el libre acceso de perros provenientes de viviendas cercanas o fincas agrícolas circundantes (Weber, 2010). En paisajes rurales y periurbanos similares, los perros suelen desplazarse diariamente entre áreas habitadas y fragmentos boscosos, mediante el uso de senderos y caminos como rutas de movimiento y aprovechan recursos alimenticios tanto de origen humano como presas silvestres (Hughes & Macdonald, 2013; Weber, 2010).
Desde la perspectiva del manejo de fauna silvestre, los resultados sugieren que el control y monitoreo de perros asilvestrados debería convertirse en una prioridad para la administración del refugio y del Corredor Biológico Alexander Skutch. Entre las acciones potenciales se incluyen campañas comunitarias de educación ambiental sobre tenencia responsable de mascotas, programas de esterilización, restricción del acceso de perros a sectores sensibles del refugio y fortalecimiento de la coordinación con comunidades vecinas y autoridades municipales (Hughes & Macdonald, 2013; Weber, 2010).
Asimismo, los sitios que presentaron simultáneamente alta riqueza de mamíferos silvestres y elevados registros de perros, como El Baco, El Baco Arriba y La Toma, podrían constituir áreas prioritarias para el monitoreo y la implementación de medidas de manejo orientadas a reducir las interacciones entre fauna asilvestrada y silvestre. Futuras investigaciones deberían evaluar explícitamente las relaciones espaciales y temporales entre perros, gatos y fauna silvestre mediante análisis de ocupación o patrones de actividad, con el fin de cuantificar el grado de solapamiento y estimar posibles efectos sobre las poblaciones nativas.
En conjunto, nuestros resultados muestran que Los Cusingos continúa funcionando como un importante refugio para la biodiversidad del sur de Costa Rica. Sin embargo, también evidencian que las reservas privadas inmersas en matrices agrícolas y periurbanas enfrentan crecientes desafíos asociados a la presencia de fauna asilvestrada. La conservación efectiva de estos remanentes boscosos dependerá no solo del mantenimiento de la cobertura forestal y la conectividad del paisaje, sino también de la implementación de estrategias integrales de manejo que incorporen las interacciones entre las comunidades humanas y la fauna doméstica.
AGRADECIMIENTOS
Agradecemos al personal del Refugio de Aves Dr. Alexander Skutch-Los Cusingos y al Centro Científico Tropical por el apoyo logístico y el acceso al sitio de estudio. Asimismo, agradecemos a las personas colaboradoras que participaron en el trabajo de campo y en la revisión de las cámaras trampa. N.A.A. agradece especialmente a Diego Quesada Araya, Ingeniero Forestal de la Universidad Técnica Nacional, y a su familia por el apoyo brindado durante el desarrollo de la investigación. L.I.L.U. agradece a Daniel Tobías, de Ciencias Básicas de la Universidad Técnica Nacional de Costa Rica, Sede de Atenas, Alajuela, por el tiempo y el apoyo académico brindado durante el proceso de investigación.
DECLARACIÓN DE ÉTICA, CONFLICTO DE INTERESES Y FINANCIAMIENTO
Los autores declaran haber cumplido con todos los requisitos éticos y legales pertinentes durante el desarrollo del estudio y la elaboración del manuscrito. La investigación se realizó mediante métodos no invasivos basados en observación directa y cámaras trampa, sin manipulación ni colecta de especímenes de fauna silvestre. Asimismo, declaran que no existen conflictos de interés de ningún tipo y que todas las fuentes de apoyo financiero y logístico se indican claramente en la sección de agradecimientos. Todas las personas autoras están de acuerdo con la versión final editada del manuscrito. Un documento firmado ha sido archivado en los registros de la revista.
La contribución de cada persona autora al manuscrito fue la siguiente: N.A.A.: diseño del estudio, trabajo de campo, recolección de datos, análisis de datos y preparación del manuscrito. L.I.L.U.: revisión de resultados, preparación y revisión del manuscrito. J.M.M.: preparación y revisión del manuscrito.
REFERENCIAS
Acevedo, H. A., Arroyo, M., & Obando, V. (2016). Corredor Biológico Alexander Skutch: análisis de fragmentación y rutas de conectividad estructural. Agathos Natura. San José, Costa Rica.
Acuña-Prado, E., Molina-Jiménez, J. N., & Rodríguez-Vindas, S. (2017). Análisis de la estructura del paisaje en el Corredor Biológico Alexander Skutch, Pérez Zeledón, en los años 2005, 2012 y 2016 [Seminario de graduación de licenciatura, Universidad Nacional]. Repositorio Académico Institucional de la Universidad Nacional. https://repositorio.una.ac.cr/items/48e43168-fabb-48f0-9b17-8b88649c249b
Álvarez-Romero, J. G., Medellín, R. A., Oliveras de Ita, A., Gómez de Silva, H., & Sánchez, O. (2008). Animales exóticos en México: una amenaza para la biodiversidad. Comisión Nacional para el Conocimiento y Uso de la Biodiversidad; Instituto de Ecología, UNAM; Secretaría de Medio Ambiente y Recursos Naturales.
Arauz-Beita, I., & Arias-Navarro, A. (2016). Corredores biológicos como potenciadores del desarrollo local: estudio de caso del Corredor Biológico Alexander Skutch. Universidad en Diálogo: Revista de Extensión, 6(1), 67–79. https://doi.org/10.15359/udre.6-1.4
Brower, J. E., Zar, J. H., & Von Ende, C. N. (1998). Field and laboratory methods for general ecology. (4th ed.). WCB McGraw Hill.
Centro Científico Tropical. (2022). Datos de la estación meteorológica ubicada en Los Cusingos, Quizarrá, Pérez Zeledón, Costa Rica [Base de datos no publicada]. Centro Científico Tropical.
Costanzi, L., Brambilla, A., Di Blasio, A., Dondo, A., Goria, M., Masoero, L., Gennero, M. S., & Bassano, B. (2021). Beware of dogs! Domestic animals as a threat for wildlife conservation in Alpine protected areas. European Journal of Wildlife Research, 67(4), 70. https://doi.org/10.1007/s10344-021-01510-5
Gálvez, N., Infante, J., Fernandez, A., Díaz, J., & Petracca, L. (2021). Land use intensification coupled with free-roaming dogs as potential defaunation drivers of mesocarnivores in agricultural landscapes. Journal of Applied Ecology, 58(12), 2962–2974. https://doi.org/10.1111/1365-2664.14026
Hernández, C. M. (2010). Elaboración de una propuesta de plan de manejo para el Refugio de Aves Dr. Alexander Skutch “Los Cusingos” [Proyecto final de graduación, Universidad para la Cooperación Internacional]. Repositorio UCI. https://omeka.campusuci2.com/biblioteca/files/original/70524bca6fbd6b77333f059a61c9205e.pdf
Holdridge, L. R. (1967). Life zone ecology. Tropical Science Center.
Hughes, J., & Macdonald, D. W. (2013). A review of the interactions between free-roaming domestic dogs and wildlife. Biological Conservation, 157, 341–351. https://doi.org/10.1016/j.biocon.2012.07.005
Joyce, F. H., Rosales, J. A., Holl, K. D., Zahawi, R. A., Bui, A., & Reid, J. L. (2024). Active restoration accelerates recovery of tropical forest bird assemblages over two decades. Biological Conservation, 293, 110593. https://doi.org/10.1016/j.biocon.2024.110593
Latta, S. C., Brouwer, N. L., Olivieri, A., Girard-Woolley, J., & Richardson, J. F. (2017). Long-term monitoring reveals an avian species credit in secondary forest patches of Costa Rica. PeerJ, 5, e3539. https://doi.org/10.7717/peerj.3539
Loss, S. R., Will, T., & Marra, P. P. (2013). The impact of free-ranging domestic cats on wildlife of the United States. Nature Communications, 4, 1396. https://doi.org/10.1038/ncomms2380
Mejía, M. (2017). Refugio de aves Los Cusingos: la finca del eminente ornitólogo Dr. Alexander Skutch. Ambientico, 263, 36–39. https://www.ambientico.una.ac.cr/wp-content/uploads/tainacan-items/5/27753/263_36-39.pdf
Mora, J. M. (2025). Dice’s Cottontail Sylvilagus dicei Harris, 1932. En C. Lorenzo Monterrubio & J. M. Mora (Eds.) Mammals of Middle and South America: Lagomorpha. Handbook of the Mammals of Middle and South America (pp. 115–124). Springer, Cham. https://doi.org/10.1007/978-3-031-31564-0_7-1
Mora, J. M., & López, L. I. (2026). Mamíferos de Costa Rica. Editorial Tecnológica.
Sasa, M., Chaves, G., & Porras, L. W. (2010). The Costa Rican herpetofauna: Conservation status and future perspectives. En L. D. Wilson, J. H. Townsend, & J. D. Johnson (Eds.), Conservation of Mesoamerican amphibians and reptiles (pp. 509–603). Eagle Mountain Publishing, LC.
Sistema Nacional de Áreas de Conservación. (2018). Diagnóstico del Corredor Biológico Alexander Skutch. Proyecto Implementación del Programa Nacional de Corredores Biológicos en el Marco de la Estrategia Nacional de Biodiversidad de Costa Rica SINAC/GIZ.
Stiles, F. G., & Skutch, A. F. (1989). A guide to the birds of Costa Rica. Cornell University Press.
Weber, M. (2010). Perros (Canis lupus familiaris) y gatos (Felis catus) ferales en la Reserva de la Biosfera Los Petenes, Campeche, México: diagnóstico, efectos en la fauna nativa y perspectivas de control [Informe final]. PNUD-CONANP-ECOSUR.
Wemmer, C., Kunz, T. H., Lundie-Jenkins, G., & McShea, W. J. (1996). Mammalian sign. En D. E. Wilson, F. R. Cole, J. D. Nichols, R. Rudran, & M. S. Foster (Eds.), Measuring and monitoring biological diversity: Standard methods for mammals (pp. 157–176). Smithsonian Institution Press.
Zamora-Nasca, L. B., Di Virgilio, A., & Lambertucci, S. A. (2021). Online survey suggests that dog attacks on wildlife affect many species and every ecoregion of Argentina. Biological Conservation, 256, 109041. https://doi.org/10.1016/j.biocon.2021.109041
Material suplemenTario
TABLA S1
Ubicación de las cámaras trampa instaladas en el Refugio de Aves Dr. Alexander Skutch-Los Cusingos, Pérez Zeledón, San José, Costa Rica (septiembre-noviembre 2024)
|
Cámara |
Sitio / sendero |
Coordenada X |
Coordenada Y |
|
CT1 |
Sendero Petroglifo |
083°37,738´ |
09°20,008´ |
|
CT2 |
Sendero Las Aves |
083°37,585´ |
09°20,045´ |
|
CT3 |
Sitio “El Baco” |
083°38,085´ |
09°19,766´ |
|
CT4 |
Cercanías de una toma de agua |
083°37,586´ |
09°19,771´ |
|
CT5 |
Al otro lado del Baco |
083°37,918´ |
09°19,754´ |
|
CT6 |
Sendero de investigación (detrás de la recepción de Los Cusingos) |
083°37,684´ |
09°20,330´ |
|
CT7 |
Cercanías de una naciente |
083°37,582´ |
09°20,350´ |
|
CT8 |
Alrededores del sendero Las Aves |
083°37,583´ |
09°19,910´ |
TABLA S2
Lista total de especies de aves detectadas según el método en el Refugio de Aves Dr. Alexander Skutch-Los Cusingos, Pérez Zeledón, San José, Costa Rica (septiembre-noviembre 2024)
|
Familia |
Especie |
Método |
|||
|
Accipitridae |
Rupornis magnirostris (Gmelin, 1788) |
Activo y Pasivo |
|
|||
|
Ardeidae |
Egretta caerulea (Linnaeus, 1758) |
Pasivo |
|
|||
|
Capitonidae |
Eubucco bourcierii (Lafresnaye, 1845) |
Activo |
|
|||
|
Cardinalidae |
Habia rubica (Vieillot, 1817) |
Activo y Pasivo |
|
|||
|
Cardinalidae |
Piranga rubra (Linnaeus, 1758) |
Activo |
|
|||
|
Cathartidae |
Cathartes aura (Linnaeus, 1758) |
Activo |
|
|||
|
Cathartidae |
Coragyps atratus (Bechstein, 1793) |
Activo |
|
|||
|
Columbidae |
Geotrygon montana (Linnaeus, 1758) |
Pasivo |
|
|||
|
Columbidae |
Leptotila cassinii (Lawrence, 1867) |
Activo y Pasivo |
|
|||
|
Columbidae |
Leptotila verreauxi (Bonaparte, 1855) |
Activo y Pasivo |
|
|||
|
Columbidae |
Zenaida asiatica (Linnaeus, 1758) |
Activo y Pasivo |
|
|||
|
Corvidae |
Cyanocorax morio (Wagler, 1829) |
Activo |
|
|||
|
Cotingidae |
Lipaugus unirufus ( P.L.Sclater, 1860) |
Activo |
|
|||
|
Cracidae |
Ortalis cinereiceps (G.R.Gray, 1867) |
Activo y Pasivo |
|
|||
|
Cracidae |
Penelope purpurascens (Wagler, 1830) |
Activo |
|
|||
|
Cuculidae |
Piaya cayana (Linnaeus, 1766) |
Activo |
|
|||
|
Falconidae |
Herpetotheres cachinnans (Linnaeus, 1758) |
Activo |
|
|||
|
Formicariidae |
Formicarius analis (Orbigny & Lafresnaye, 1837) |
Pasivo |
|
|||
|
Fringillidae |
Euphonia imitans (Hellmayr, 1936) |
Activo |
|
|||
|
Fringillidae |
Euphonia luteicapilla (Cabanis, 1861) |
Activo |
|
|||
|
Furnariidae |
Automolus ochrolaemus (Tschudi, 1844) |
Pasivo |
|
|||
|
Furnariidae |
Dendrocincla anabatina (P.L.Sclater, 1859) |
Pasivo |
|
|||
|
Furnariidae |
Xenops mexicanus (Sparrman, 1788) |
Activo |
|
|||
|
Furnariidae |
Xiphorhynchus susurrans (Jardine, 1847) |
Activo |
|
|||
|
Icteridae |
Icterus galbula (Linnaeus, 1758) |
Activo |
|
|||
|
Momotidae |
Momotus lessonii (R.Lesson, 1842) |
Activo y Pasivo |
|
|||
|
Onychorhynchidae |
Myiobius sulphureipygius (P.L.Sclater, 1857) |
Activo |
|
|||
|
Parulidae |
Geothlypis formosa (A.Wilson, 1811) |
Pasivo |
|
|||
|
Parulidae |
Leiothlypis peregrina (A.Wilson, 1811) |
Activo |
|
|||
|
Parulidae |
Mniotilta varia (Linnaeus, 1766) |
Activo |
|
|||
|
Parulidae |
Myiothlypis fulvicauda (von Spix, 1825) |
Activo e Pasivo |
|
|||
|
Parulidae |
Seiurus aurocapilla (Linnaeus, 1766) |
Activo y Pasivo |
|
|||
|
Parulidae |
Setophaga fusca (Statius Müller, 1776) |
Activo |
|
|||
|
Parulidae |
Setophaga pensylvanica (Linnaeus, 1766) |
Activo |
|
|||
|
Passerellidae |
Arremon aurantiirostris (Lafresnaye, 1847) |
Activo y Pasivo |
|
|||
|
Picidae |
Melanerpes chrysauchen (Salvin, 1870) |
Activo |
|
|||
|
Picidae |
Melanerpes rubricapillus (Cabanis, 1862) |
Activo |
|
|||
|
Picidae |
Picumnus olivaceus (Lafresnaye, 1845) |
Activo |
|
|||
|
Pipridae |
Ceratopipra mentalis (P.L.Sclater, 1857) |
Activo |
|
|||
|
Pipridae |
Corapipo altera (Hellmayr, 1906) |
Activo |
|
|||
|
Pipridae |
Lepidothrix velutina (Berlepsch, 1883) |
Activo |
|
|||
|
Pipridae |
Manacus aurantiacus (Salvin, 1870) |
Activo |
|
|||
|
Polioptilidae |
Ramphocaenus melanurus (Vieillot, 1819) |
Activo |
|
|||
|
Psittacidae |
Pionus senilis (Spix, 1824) |
Activo |
|
|||
|
Rallidae |
Aramides cajaneus (Statius Muller, 1776) |
Activo y Pasivo |
|
|||
|
Ramphastidae |
Pteroglossus frantzii (Cabanis, 1861) |
Activo |
|
|||
|
Ramphastidae |
Ramphastos ambiguus (Swainson, 1823) |
Activo |
|
|||
|
Strigidae |
Pulsatrix perspicillata (Latham, 1790) |
Activo |
|
|||
|
Strigidae |
Strix virgata (Cassin, 1849) |
Activo |
|
|||
|
Thamnophilidae |
Gymnopithys bicolor (Lawrence, 1863) |
Pasivo |
|
|||
|
Thamnophilidae |
Microrhopias quixensis (Cornalia, 1849) |
Activo |
|
|||
|
Thamnophilidae |
Poliocrania exsul (P.L.Sclater, 1859) |
Activo y Pasivo |
|
|||
|
Thamnophilidae |
Thamnophilus bridgesi (P.L.Sclater, 1856) |
Activo |
|
|||
|
Thraupidae |
Chlorophanes spiza (Linnaeus, 1758) |
Activo |
|
|||
|
Thraupidae |
Coereba flaveola (Linnaeus, 1758) |
Activo y Pasivo |
|
|||
|
Thraupidae |
Dacnis cayana (Linnaeus, 1766) |
Activo |
|
|||
|
Thraupidae |
Eucometis penicillata (Spix, 1825) |
Activo y Pasivo |
|
|||
|
Thraupidae |
Ixothraupis guttata (Cabanis, 1851) |
Activo |
|
|||
|
Thraupidae |
Loriotus luctuosus (d'Orbigny & Lafresnaye, 1837) |
Activo |
|
|||
|
Thraupidae |
Ramphocelus passerinii (Bonaparte, 1831) |
Activo |
|
|||
|
Thraupidae |
Saltator maximus (P.L.S.Müller, 1776) |
Activo |
|
|||
|
Thraupidae |
Sporophila corvina (P.L.Sclater, 1860) |
Activo |
|
|||
|
Thraupidae |
Stilpnia larvata (Du Bus de Gisignies, 1846) |
Activo |
|
|||
|
Thraupidae |
Tangara gyrola (Linnaeus, 1758) |
Activo |
|
|||
|
Thraupidae |
Thraupis espiscopus (F.Boie, 1826) |
Activo |
|
|||
|
Thraupidae |
Thraupis palmarum (Wied-Neuwied, 1821) |
Activo |
|
|||
|
Tinamidae |
Crypturellus soui (Hermann, 1783) |
Pasivo |
|
|||
|
Tinamidae |
Tinamus major (J.F.Gmelin, 1789) |
Activo y Pasivo |
|
|||
|
Tityridae |
Pachyramphus polychopterus (Vieillot, 1818) |
Activo |
|
|||
|
Tityridae |
Tityra inquisitor (Lichtenstein, 1823) |
Activo |
|
|||
|
Tityridae |
Tityra semifasciata (Spix, 1825) |
Activo |
|
|||
|
Trochilidae |
Amazilia tzacatl (de la Llave, 1833) |
Activo |
|
|||
|
Trochilidae |
Heliothryx barroti (Bourcier, 1843) |
Activo |
|
|||
|
Trochilidae |
Phaeochroa cuvierii (Delattre & Bourcier, 1846) |
Activo |
|
|||
|
Trochilidae |
Phaethornis longirostris (Delattre, 1843) |
Activo |
|
|||
|
Trochilidae |
Phaethornis striigularis (Gould, 1854) |
Activo |
|
|||
|
Troglodytidae |
Cantorchilus semibadius (Salvin, 1870) |
Activo |
|
|||
|
Troglodytidae |
Henicorhina leucophrys (Tschudi, 1844) |
Activo |
|
|||
|
Troglodytidae |
Henicorhina leucosticta (Cabanis, 1847) |
Pasivo |
|
|||
|
Trogonidae |
Trogon tenellus (Cabanis, 1862) |
Activo |
|
|||
|
Turdidae |
Catharus aurantiirostris (Hartlaub, 1850) |
Pasivo |
|
|||
|
Turdidae |
Catharus ustulatus (Nuttall, 1840) |
Activo y Pasivo |
|
|||
|
Turdidae |
Turdus assimilis (Cabanis, 1850) |
Pasivo |
|
|||
|
Turdidae |
Turdus grayi (Bonaparte, 1838) |
Activo y Pasivo |
|
|||
|
Tyrannidae |
Attila spadiceus (Gmelin, 1789) |
Activo |
|
|||
|
Tyrannidae |
Megarynchus pitangua (Linnaeus, 1766) |
Activo |
|
|||
|
Tyrannidae |
Mionectes oleagineus (Lichtenstein, 1823) |
Activo |
|
|||
|
Tyrannidae |
Myiarchus tuberculifer (Orbigny & Lafresnaye, 1837) |
Activo |
|
|||
|
Tyrannidae |
Myiozetetes similis (Spix, 1825) |
Activo |
|
|||
|
Tyrannidae |
Pitangus sulphuratus (Linnaeus, 1766) |
Activo |
|
|||
|
Tyrannidae |
Platyrinchus coronatus (P.L.Sclater, 1858) |
Activo |
|
|||
|
Tyrannidae |
Todirostrum cinereum (Linnaeus, 1766) |
Activo |
|
|||
|
Tyrannidae |
Tolmomyias sulphurescens (Spix, 1825) |
Activo |
|
|||
|
Tyrannidae |
Tyrannus melancholicus (Vieillot, 1819) |
Activo |
|
|||
|
Vireonidae |
Pachysylvia decurtata (Bonaparte, 1838) |
Activo |
|
|||
|
Vireonidae |
Vireo flavifrons (Vieillot, 1808) |
Activo |
|
|||
|
Vireonidae |
Vireolanius pulchellus (P.L.Sclater & Salvin, 1859) |
Activo |
|
|||